壹生大学

壹生身份认证协议书

本项目是由壹生提供的专业性学术分享,仅面向医疗卫生专业人士。我们将收集您是否是医疗卫生专业人士的信息,仅用于资格认证,不会用于其他用途。壹生作为平台及平台数据的运营者和负责方,负责平台和本专区及用户相关信息搜集和使用的合规和保护。
本协议书仅为了向您说明个人相关信息处理目的,向您单独征求的同意,您已签署的壹生平台《壹生用户服务协议》和《壹生隐私政策》,详见链接:
壹生用户服务协议:
https://apps.medtrib.cn/html/serviceAgreement.html
壹生隐私政策:
https://apps.medtrib.cn/html/p.html
如果您是医疗卫生专业人士,且点击了“同意”,表明您作为壹生的注册用户已授权壹生平台收集您是否是医疗卫生专业人士的信息,可以使用本项服务。
如果您不是医疗卫生专业人士或不同意本说明,请勿点击“同意”,因为本项服务仅面向医疗卫生人士,以及专业性、合规性要求等因素,您将无法使用本项服务。

同意

拒绝

同意

拒绝

知情同意书

同意

不同意并跳过

工作人员正在审核中,
请您耐心等待
审核未通过
重新提交
完善信息
{{ item.question }}
确定
收集问题
{{ item.question }}
确定
您已通过HCP身份认证和信息审核
(
5
s)

血液净化|肠道菌群在腹膜透析相关性腹膜炎中的机制研究进展

2026-11-02 作者:金烷烃资讯
非原创

摘 要

腹膜透析相关性腹膜炎(PDAP)是导致腹膜透析(PD)患者技术失败和死亡的首要并发症。PD患者普遍存在肠道菌群生态失调,其特征为多样性下降、有益菌减少及机会性致病菌富集,该失调状态可通过破坏肠道屏障、诱发细菌及内毒素易位,并驱动免疫代谢紊乱等机制,为PDAP的发生提供了易感条件。本文旨在系统阐述肠道菌群失调如何作为关键桥梁,启动与加剧PDAP的病理进程,深度剖析其背后的分子机制,并探讨相关的潜在治疗策略。

腹膜透析(PD)是终末期肾病(ESKD)患者重要的肾脏替代治疗方式之一,腹膜透析相关性腹膜炎(PDAP)作为最常见且严重的并发症,是导致PD技术失败、患者住院率升高和死亡风险增加的主要原因[1],其具体的发病机制尚未完全阐明。

肠-肾轴学说阐释了肠道菌群与肾脏间的双向调控网络,成为近年来的学术热点。在慢性肾脏病(CKD)状态下,肠道菌群紊乱导致肠道屏障功能受损,并促进肠源性毒素易位入血,可激活宿主免疫炎症,是加重肾损伤的重要途径[2]。短链脂肪酸(SCFA)是肠道菌群的重要代谢产物,主要包括乙酸、丙酸和丁酸等,其在人体免疫系统、新陈代谢、内分泌功能以及信号传导过程中发挥着重要作用,同时也是肠道与其他器官之间交流的重要物质。CKD患者普遍存在肠道菌群失调,其特征为产SCFA的有益菌群丰度下降,机会性致病菌相对增多,这种微生态失衡与尿毒症毒素的蓄积产生协同效应,共同损害肠道黏膜物理屏障功能,导致肠道通透性异常增高,在此病理基础上,肠道内的活菌及其代谢产物可穿过受损的上皮屏障发生易位[3]。PD患者长期处于高糖、高渗透压透析液的特殊微环境中,腹腔与肠道解剖位置毗邻,极易成为易位微生物及其产物的主要靶向部位,从而启动PDAP的病理进程。本文旨在阐释肠道菌群参与PDAP发病的分子与免疫机制(图1),为开发针对微生态调节的新型防治策略提供理论依据。

图1 肠道菌群失衡驱动腹膜透析相关性腹膜炎的发病机制图
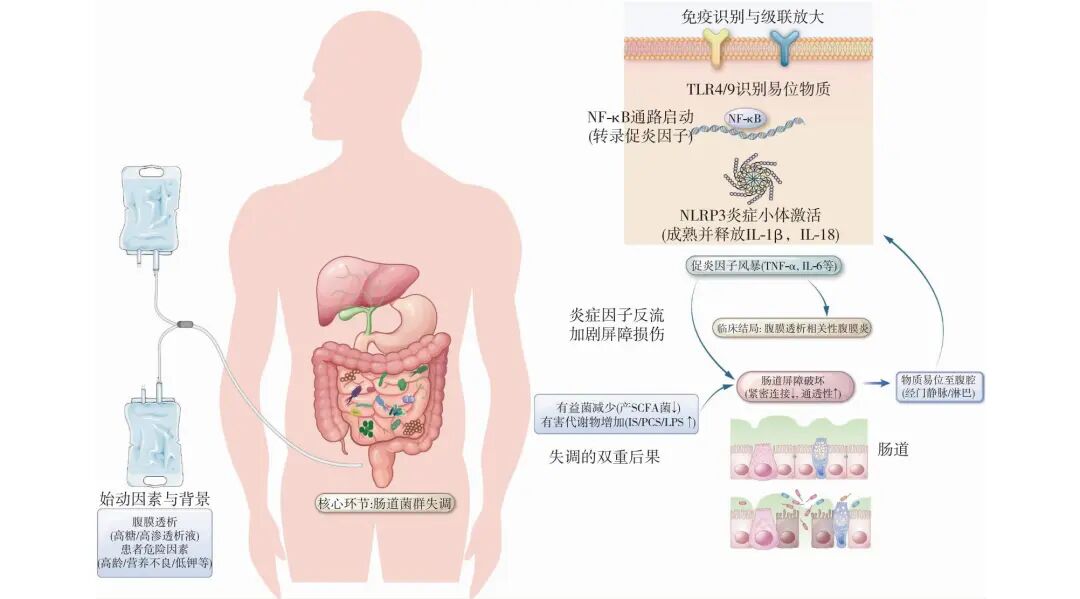
图1

TLR:Toll样受体;TNF-α:肿瘤坏死因子α;NLRP3:NOD样受体蛋白3;IL:白细胞介素;NF-κB:核因子κB;SCFA:短链脂肪酸;IS:硫酸吲哚酚;PCS:硫酸对甲酚;LPS:脂多糖

PD对肠道菌群结构与功能的影响

肾功能下降会导致胃肠道尿素水平升高,细菌尿素酶可将其分解成氨从而形成碱性环境,抑制产SCFA的有益菌群生长,促进产尿毒症毒素的致病菌繁殖[4]。肠道菌群在肠源性毒素的生成中扮演着核心角色,典型的此类毒素包括硫酸吲哚酚(IS)、硫酸对甲酚(PCS)、苯乙酰谷氨酰胺以及三甲胺N-氧化物(TMAO)等。这些肠源性毒素可损害肠道屏障功能,促进内毒素进入血液循环,加剧慢性炎症和氧化应激,从而推进肾脏纤维化进程[5-6]。

PD治疗通过周期性交换葡萄糖透析液清除溶质,会对患者肠道菌群的组成及功能产生独特影响。有报道,与健康对照组相比,PD患者的肠道微生物群α多样性较低,其组成发生显著变化。在属水平上,机会性致病菌的数量增加,而有益菌的数量则减少[7]。更有研究指出,此种失调模式部分源于PD本身,Wang等[8]发现,与非透析ESKD患者相比,PD患者在微生物丰度和结构上存在显著差异,尤其在乳杆菌属物种层面。另有研究指出PD患者的肠道菌群多样性低于血液透析及非透析ESKD患者[9],进一步提示PD会对肠道菌群造成显著影响。这种菌群的失调可能与长期口服铁剂及高渗透析液中葡萄糖的全身吸收有关,铁剂可抑制产SCFA属细菌的生长并促进蛋白水解细菌增殖[10];同时,15%~20%的透析液葡萄糖会透过腹膜毛细血管,形成富含碳源的环境,促进肠道细菌过度生长[11]。相较于未发生腹膜炎的PD患者,PDAP患者中具有抗炎作用和产生SCFA的菌群,如普拉梭菌属、罗氏菌属的丰度显著降低;而肠杆菌科、肠球菌属等机会致病菌则相对增多[12]。研究指出肠杆菌科的扩增,会破坏肠道内的微生态平衡,从而导致毒素水平上升,是导致PDAP发生的有害菌群[13]。学者进一步发现其分泌的脂多糖与革兰阴性菌PDAP发生率的增高直接相关[14]。由革兰阴性菌引起的腹腔感染多与肠道菌群的迁移等内源性因素有关,而革兰阳性菌引起的腹腔感染则多与伤口护理不当等外源性因素有关,研究初步证实革兰阳性菌PDAP患者与革兰阴性菌PDAP患者的肠道微生物群β多样性存在显著差异[15]。一项针对大肠杆菌PDAP的研究表明,此类患者的消化系统相关通路、能量代谢相关通路、蛋白质折叠与降解相关通路,以及糖链生物合成与代谢相关通路的活性均显著降低,这在一定程度上提示革兰阴性菌会导致更恶劣的肠道微生物环境[16]。在现有研究中,肠道菌群失调的具体特征存在差异,这主要源于患者人群的特异性和试验方法的不同,未来研究需基于更精细的宿主分层和更统一的检测标准,才能得出更为精准的结论。

代谢组学分析进一步揭示了PD相关菌群的核心功能缺陷,SCFA合成通路,尤其是丁酸盐合成途径的关键酶基因表达显著下调,而尿毒症毒素和脂多糖的合成通路则明显上调[17],这种功能失衡导致保护性代谢物减少而有害物质产生增多,从而损害肠道屏障完整性,并通过能量代谢紊乱与免疫调节功能障碍,诱发全身性代谢失调[18]。

肠道菌群驱动PDAP的核心机制

肠道通过肠系膜连接于后腹壁,肠壁的脏层腹膜与腹壁的壁层腹膜在解剖上直接相邻。当肠道屏障受损时,细菌可穿过肠壁黏膜层,最终进入腹膜腔。腹膜主要由间皮细胞构成,具有屏障功能,并参与物质的超滤与扩散过程[19]。肠道来源的代谢产物,如TMAO、IS及脂多糖,可经巨噬细胞和间皮细胞中的信号通路激活并促进白细胞介素(IL)-6和肿瘤坏死因子α(TNF-α)等促炎因子的释放,这些炎症因子双向攻击腹膜间皮细胞与肠上皮细胞。腹膜中的炎症因子分泌增多,诱发腹腔炎症渗出,渗出液又可侵蚀肠壁浆膜,导致肠道通透性增高与屏障功能受损,使免疫系统识别肠道微生物及其代谢物,从而诱发肠源性腹膜炎[13]。

PDAP患者肠道中产SCFA的有益菌群丰度下降,而SCFA能够激活G蛋白偶联受体,进而增强肠道紧密连接蛋白,并抑制炎症因子的产生[20]。研究已证实,SCFA在调控炎症反应中扮演着保护性角色,能够增强肠道屏障功能、抑制细菌易位,有助于减轻局部及全身性炎症,并改善肾功能[21]。SCFA水平降低会直接导致肠道通透性增加,从而促进肠道内细菌及其病原体相关分子模式(如脂多糖)的易位。

在肠道中产生的SCFA部分可被肠道上皮细胞代谢利用,以维持肠道局部稳态;其余部分则进入循环系统,进入多种组织与器官,通过抑制组蛋白去乙酰化酶活性或激活G蛋白偶联受体等机制,发挥其生物学效应[22]。G蛋白偶联受体在肠道上皮细胞、脂肪组织及免疫细胞中都存在,激活这些G蛋白偶联受体可抑制环磷酸腺苷(cAMP)依赖性的信号通路,激活mTOR信号通路,并抑制核因子κB(NF-κB)信号通路,从而减轻炎症反应[23]。易位的脂多糖、细菌DNA通过门脉系统或淋巴循环抵达腹腔,可被腹膜巨噬细胞和间皮细胞表面的Toll样受体(TLR)4/TLR9识别,进而触发下游NF-κB/NOD样受体蛋白3(NLRP3)炎症小体反应,促使TNF-α、IL-1β和IL-6等促炎细胞因子大量释放,从而加重全身性的微炎症反应及器官损伤[6,24],上述过程成为触发腹腔局部炎症反应的关键因素。

菌群失调还通过影响尿毒症毒素代谢加剧PDAP的发病进程。肠道菌群代谢产生的尿毒症毒素前体(如IS和PCS),在PD患者体内蓄积。研究显示,这些毒素不仅能直接损伤肠屏障,还可通过激活活性氧产生和NLRP3炎症小体途径,加剧腹膜局部炎症反应[18]。高龄、低白蛋白血症、使用高糖PD液、残余肾功能减退、低钾血症是PDAP发生的危险因素,菌群失调是连接和放大这些危险因素的核心环节之一。高龄及低白蛋白血症可导致肠上皮细胞再生与修复能力下降,紧密连接蛋白合成减少,削弱机械屏障。高糖透析液为腹腔内潜在病原体提供底物,还可引起局部腹膜血管病变。残余肾功能减退所致的尿毒症毒素蓄积,会抑制有益菌群生长,促进产毒素菌群增殖,形成肠源性毒素蓄积与菌群失调的恶性循环。低钾血症引起的肠蠕动减弱,延长了结肠转运时间,可导致代谢产物异常累积。这些多因素相互作用,共同导致肠道菌群平衡、上皮紧密连接及免疫功能受损,使得肠道内机会性致病菌及其产物易位至腹腔,最终引发腹膜炎。

PDAP治疗中广谱抗生素的使用可能进一步加剧肠道菌群失调,形成“感染-抗生素使用-菌群失调-再感染”的恶性循环。抗生素在抗感染治疗的同时,会显著影响肠道菌群,可引起SCFA及脂多糖等代谢产物水平变化,进而削弱肠道屏障功能,反而增加宿主对感染性疾病的易感性[25],这可能是部分患者反复发作PDAP的重要原因。广谱抗生素能有效控制感染,但无差别地清除大量共生菌,会导致菌群多样性下降,加剧肠道屏障损伤与再感染概率。基于病原菌药敏结果的窄谱抗生素对整体菌群的扰动更小,更利于维持生态稳定。初始经验性治疗应基于当地流行病学数据,在获得药敏结果后应尽快降阶梯至窄谱、敏感抗生素,并严格遵循疗程。

综上所述,肠道菌群失调通过破坏肠道屏障、激活免疫炎症、改变代谢产物谱及受抗生素影响等多个相互关联的机制,共同推动PDAP的发生与发展。因潜在混杂因素及反向因果关系的干扰,二者间的因果关系尚难完全确立,深入理解这些机制将为开发针对肠道菌群的PDAP防治新策略提供重要理论基础。

靶向肠道菌群的潜在治疗策略

益生菌及其衍生物 益生菌是通过食物或补充剂摄入的活微生物,在PD领域,其在PD患者中的应用旨在直接补充肠道内有益菌群,竞争性抑制致病菌增殖,强化肠屏障,并调节系统性免疫,常用的菌株包括乳酸杆菌和双歧杆菌。Liu等[26]进行的一项单中心研究表明,补充副干酪乳酸杆菌12周后,PD患者肠道中厚壁菌门丰度显著上升,机会性致病菌丰度降低,且上述变化与胃肠道症状的改善具有相关性。另有研究证实,补充特定益生菌株可显著降低PDAP的发生率,并改善其炎症标志物水平及营养状态[27]。关于益生菌的研究主要集中在它们清除尿毒症毒素的能力上,但研究结果存在显著差异,这主要源于其效果具有严格的菌株和剂量依赖性,且受患者个体肠道微生态基线差异的显著影响。因此,益生菌并非通用方案,其疗效取决于特定菌株、足量长期干预与宿主肠道环境的精准匹配。灭活益生菌、后生元等益生菌衍生物因其稳定性高、安全性好,也展现出潜在的应用前景。

精准化饮食干预 饮食干预需在调节肠道菌群与满足PD患者营养需求之间取得平衡。部分学者提出富含植物纤维的膳食可促进SCFA菌群的生长,从而降低肠道pH值,抑制病原体生长,并发挥全身性抗炎作用[23]。一项横断面研究证实,即使摄入少量的全谷物、块茎类及根茎类蔬菜也有助于改善PD患者的肠道微生物群结构[28]。现有证据表明,补充抗性淀粉后人体内SCFA的产量有所增加[29]。在保证充足优质蛋白摄入的同时,需避免因过量蛋白质摄入在结肠内代谢产生大量氨、硫化氢等有害物质,加剧菌群失调和尿毒症毒素蓄积。根据患者的残余肾功能、代谢状况和菌群特征进行定制,是未来实现有效饮食干预的关键。

粪菌移植(FMT) FMT将健康供者粪便中的功能菌群整体移植到患者肠道内,以迅速重建健康的肠道微生态系统。理论上,FMT能一次性引入多样化的菌群群落,修复肠道屏障,减少病原菌及其代谢产物的易位,降低炎症因子释放水平,从而恢复微生物的生态系统功能。动物实验提示,FMT可以显著下调尿毒症毒素含量、改善代谢并发症[30]。一项临床试验将CKD分期为2~4期的患者随机分为两组,其中一组接受FMT治疗,另一组则服用安慰剂胶囊,接受FMT治疗的患者,其肾脏病的进展程度明显更低[31]。Marasco等[32]也成功使用FMT技术治疗了1例反复发生艰难梭菌感染的PD患者。然而,目前的相关研究主要基于动物模型及小型试点研究,缺乏能够反映治疗效果的客观指标,也尚未形成可供临床使用的产品或治疗方案,由于PD患者存在腹膜屏障受损、免疫功能紊乱等问题,将FMT应用于这一特殊人群在临床应用中面临巨大挑战。

小 结

肠道菌群失调在PDAP的发生与发展中扮演着核心角色,不仅是导致肠道屏障受损、细菌及内毒素易位的“始动环节”,更是驱动局部及全身免疫代谢紊乱的“关键桥梁”。深入阐明肠道菌群通过肠-肾轴影响PDAP的具体分子机制,不仅为理解该疾病的病理生理提供了新视角,也为未来开发以菌群为靶点的防治策略(如益生菌、膳食干预、FMT等)奠定了坚实的理论基础。该领域仍需着力填补以下关键空白:①开展前瞻性研究以明确菌群与PDAP风险的因果关系;②探索菌群代谢产物作为早期诊断生物标志物的潜力;③开发并验证基于患者菌群特征的个性化益生菌配方与定制化饮食方案;④通过严谨的临床研究系统评估FMT在PD患者中的安全性、有效性及可操作性,解决供者筛选、标准化制备等关键技术难点。对未来这些方向的深入探索,将推动理论认识向个体化临床干预的转化,最终为改善PDAP预后提供新路径。

参考文献

共 32 条 · 上下滑动查看全部

1 成水芹. 《2022国际腹膜透析协会关于腹膜透析相关性腹膜炎防治指南建议》的解读. 肾脏病与透析肾移植杂志, 2022, 31(6): 550-555.

2 KNAUF F, BREWER J R, FLAVELL R A. Immunity, microbiota and kidney disease. Nat Rev Nephrol, 2019, 15(5): 263-274.

3 包满辰, 邹建洲, 俞小芳. 肠道菌群在肾脏疾病及治疗中的研究进展. 复旦学报(医学版), 2020, 47(6): 923-928.

4 WONG J, PICENO Y M, DESANTIS T Z, et al. Expansion of urease- and uricase-containing, indole- and p-cresol-forming and contraction of short-chain fatty acid-producing intestinal microbiota in ESRD. Am J Nephrol, 2014, 39(3): 230-237.

5 GLORIEUX G, GRYP T, PERNA A. Gut-Derived Metabolites and Their Role in Immune Dysfunction in Chronic Kidney Disease. Toxins (Basel), 2020, 12(4): 245.

6 RYSZ J, FRANCZYK B, ŁAWIŃSKI J, et al. The Impact of CKD on Uremic Toxins and Gut Microbiota. Toxins (Basel), 2021, 13(4): 252.

7 BAO M, ZHANG P, GUO S, et al. Altered gut microbiota and gut-derived p-cresyl sulfate serum levels in peritoneal dialysis patients. Front Cell Infect Microbiol, 2022, 12: 639624.

8 WANG J, WU S, ZHANG J, et al. Correlation between gut microbiome and cognitive impairment in patients undergoing peritoneal dialysis. BMC Nephrol, 2023, 24(1): 360.

9 HU J, ZHONG X, YAN J, et al. High-throughput sequencing analysis of intestinal flora changes in ESRD and CKD patients. BMC Nephrol, 2020, 21(1): 12.

10 RIBEIRO M, FONSECA L, ANJOS J S, et al. Oral iron supplementation in patients with chronic kidney disease: Can it be harmful to the gut microbiota? Nutr Clin Pract, 2022, 37(1): 81-93.

11 SZETO C C, JOHNSON D W. Low GDP Solution and Glucose-Sparing Strategies for Peritoneal Dialysis. Semin Nephrol, 2017, 37(1): 30-42.

12 何阶德, 黄朦, 黄存军. 腹膜透析相关性腹膜炎患者肠道菌群变化研究. 检验医学与临床, 2024, 21(7): 923-928.

13 XU P, ZHANG M, CUI S, et al. Gut microbiome and peritoneal inflammation: a new perspective on peritoneal dialysis-associated peritonitis. Ren Fail, 2025, 47(1): 2542532.

14 MILAN MANANI S, VIRZÌ G M, GIULIANI A, et al. Lipopolysaccharide Evaluation in Peritoneal Dialysis Patients with Peritonitis. Blood Purif, 2020, 49(4): 434-439.

15 ZHANG L, ZHANG H, SU S, et al. Risk factor assessment and microbiome analysis in peritoneal dialysis-related peritonitis reveal etiological characteristics. Front Immunol, 2024, 15: 1443468.

16 ZHOU J, YANG C, LEI W, et al. Exploration of the correlation between intestinal flora and peritoneal dialysis-related peritonitis. Clin Exp Nephrol, 2022, 26(10): 1030-1038.

17 LI J, XING H, LIN W, et al. Specific gut microbiome and metabolome changes in patients with continuous ambulatory peritoneal dialysis and comparison between patients with different dialysis vintages. Front Med (Lausanne), 2023, 10: 1302352.

18 WANG Q, HAN Y, PANG L, et al. Gut microbiome remodeling in chronic kidney disease: implications of kidney replacement therapies and therapeutic interventions. Front Med (Lausanne), 2025, 12: 1620247.

19 ZHANG L, XIE F, TANG H, et al. Gut microbial metabolite TMAO increases peritoneal inflammation and peritonitis risk in peritoneal dialysis patients. Transl Res, 2022, 240: 50-63.

20 WANG H, HUANG X, TAN H, et al. Interaction between dietary fiber and bifidobacteria in promoting intestinal health. Food Chem, 2022, 393: 133407.

21 DU Y, TANG G, YUAN W. Suppression of HDAC2 by sodium butyrate alleviates apoptosis of kidney cells in db/db mice and HG-induced NRK-52E cells. Int J Mol Med, 2020, 45(1): 210-222.

22 YAMAMURA R, NAKAMURA K, KITADA N, et al. Associations of gut microbiota, dietary intake, and serum short-chain fatty acids with fecal short-chain fatty acids. Biosci Microbiota Food Health, 2020, 39(1): 11-17.

23 YU W, SUN S, FU Q. The role of short-chain fatty acid in metabolic syndrome and its complications: focusing on immunity and inflammation. Front Immunol, 2025, 16: 1519925.

24 MARTIN-GALLAUSIAUX C, MARINELLI L, BLOTTIÈRE H M, et al. SCFA: mechanisms and functional importance in the gut. Proc Nutr Soc, 2021, 80(1): 37-49.

25 苏继烽, 石斌. 抗生素对肠道菌群及代谢影响的研究进展. 中国微生态学杂志, 2024, 36(7): 855-859.

26 LIU S, LIU H, CHEN L, et al. Effect of probiotics on the intestinal microbiota of hemodialysis patients: a randomized trial. Eur J Nutr, 2020, 59(8): 3755-3766.

27 潘阳彬, 林贝多, 戴宾宾, 等. 益生菌对腹膜透析患者营养不良及腹膜炎发病率的影响. 中国中西医结合肾病杂志, 2020, 21(6): 493-496.

28 RAMOS C I, DE ANDRADE L S, TEIXEIRA R R, et al. Diet Quality Components and Gut Microbiota of Patients on Peritoneal Dialysis. J Ren Nutr, 2025, 35(3): 454-462.

29 SOBH M, MONTROY J, DAHAM Z, et al. Tolerability and SCFA production after resistant starch supplementation in humans: a systematic review of randomized controlled studies. Am J Clin Nutr, 2022, 115(3): 608-618.

30 ASSIMAKOPOULOS S F, PAPADOPOULOU I, BANTOUNA D, et al. Fecal Microbiota Transplantation and Hydrocortisone Ameliorate Intestinal Barrier Dysfunction and Improve Survival in a Rat Model of Cecal Ligation and Puncture-Induced Sepsis. Shock, 2021, 55(5): 666-675.

31 ARTEAGA-MULLER G Y, FLORES-TREVIÑO S, BOCANEGRA-IBARIAS P, et al. Changes in the Progression of Chronic Kidney Disease in Patients Undergoing Fecal Microbiota Transplantation. Nutrients, 2024, 16(8): 1109.

32 MARASCO G, CANNARILE D C, CREMON C, et al. Fecal microbiota transplantation for Clostridioides difficile infection in a peritoneal dialysis patient: A case report. Perit Dial Int, 2025, 45(4): 247-250.

来源:肾脏病与透析肾移植杂志订阅号

作者:陈杏玲1 滕彦波2 章俊3(综述) 郭婷婷3(审校)

作者单位:1惠州市第一人民医院肾内科(惠州,516000);2暨南大学附属第一医院肾内科;3南方医科大学珠江医院肾内科


200 评论

查看更多