
200
评论
查看更多
密码过期或已经不安全,请修改密码
修改密码
壹生身份认证协议书
同意
拒绝
同意
拒绝
同意
不同意并跳过


摘 要
目的 探讨六维磷脂治疗酒精相关肾损伤的保护作用及分子机制。
方法 无特定病原体(SPF)级C57BL/6雄性小鼠随机分为3组:对照组(NC)、酒精相关肾损伤组(ETOH)和六维磷脂处理组(ETOH+HexaV)。通过HE、Masson和PAS染色观察肾脏组织病理变化,利用小鼠肾脏组织进行转录组测序分析,通过实时荧光定量PCR(qPCR)进一步验证相关基因mRNA水平变化。
结果 酒精灌胃8周后,与NC组相比,ETOH组肾脏HE染色可见肾小球萎缩,系膜增殖,间质炎性细胞浸润,肾小管上皮细胞空泡性变性。Masson染色可见蓝色胶原沉积,PAS染色可见紫红色线条增宽。在ETOH+HexaV组中,上述病理改变减轻。转录组测序结果显示,ETOH组和ETOH+HexaV组中存在27个相同的差异基因。京都基因与基因组百科全书(KEGG)富集分析,慢性酒精暴露主要影响肾素-血管紧张素系统(RAS)、内分泌和其他因子调节的钙重吸收、白细胞介素(IL)-17信号通路,且均在ETOH组被激活,但在ETOH+HexaV组被逆转。免疫组化结果显示,ETOH组血管紧张素转换酶2(ACE2)表达升高。qPCR结果显示,与NC组相比,ETOH组RAS通路中Agt、Ace2、Ren1和Klk1b3上调,IL-17信号通路中IL17d、Mmp3、Mapk10、Jun、Rela、Cebpd、Mapk4、Cxcl2、Cxcl10、Lcn2和Fosb上调。应用HexaV后上述分子均下调。
结论 HexaV通过逆转慢性酒精激活的炎症及血流动力学通路,从而改善肾脏组织损伤和功能障碍,延缓酒精性肾病进展。
长期酗酒可造成多器官损伤,其中对于肝脏、心脏和神经系统研究较多,对肾损伤的研究相对较少。长期重度饮酒会加速慢性肾脏病进展,引起肾功能异常及结构损害[1]。乙醇通过线粒体功能障碍、氧化应激和炎症直接损伤肾脏[2-4],也可通过肠道通透性改变、肝脏损伤、微循环障碍及心脏功能障碍间接促进肾损伤[5-6]。目前针对酒精相关肾损伤缺乏特异性干预措施。六维磷脂软胶囊(HexaV)是以大豆磷脂和B族维生素为主的复方制剂。大豆磷脂主要由甘油、脂肪酸和磷酸酯构成,可调节动物脂类代谢[7]。在酒精性肝损伤模型中,大豆磷脂能增强抗氧化能力并抑制肿瘤坏死因子α(TNF-α)等炎症因子[8]。但其在酒精相关肾损伤的作用尚缺乏研究。
本研究建立酒精相关肾损伤小鼠模型,并予以HexaV干预,通过转录组测序筛选差异基因及富集通路,并结合实时荧光定量PCR(qPCR)验证。重点关注肾素-血管紧张素系统(RAS)和白细胞介素(IL)-17信号通路在酒精相关肾损伤中的作用及HexaV的逆转效应。
材料与方法
动物模型 6周龄无特定病原体(SPF)级C57BL/6N小鼠(购自北京维通达生物技术有限公司)随机分为三组,每组10只。参考已报道的建立酒精肝病模型的方法[9],酒精相关肾损伤模型(ETOH)组给予32.5%乙醇灌胃,按照5 g/(kg·d)的量,1次/d×8周。正常对照(NC)组予以等量蒸馏水。ETOH+HexaV组同时予以32.5%乙醇和HexaV灌胃处理。HexaV按照等效剂量换算[10],以0.8 mg/g体重灌胃,1次/d×8周(图1A)。本动物实验方案经首都医科大学实验动物伦理委员会批准(伦理批号:AP2023046)。
图1 A:模型小鼠构建流程图;B:三组小鼠SCr水平;C:肾组织HE、Masson、PAS染色(×400)
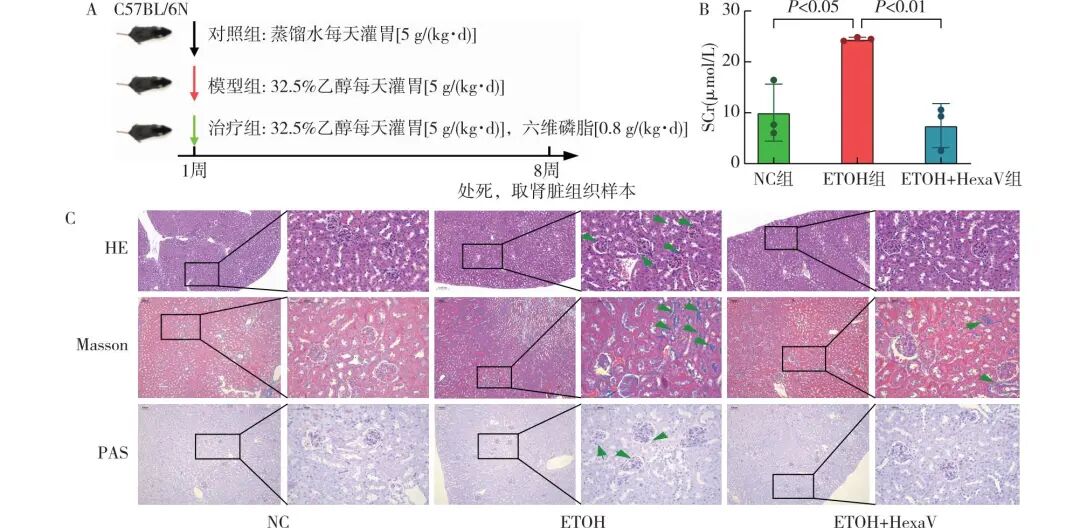
SCr:血清肌酐;NC:正常对照组;ETOH:酒精相关肾损伤模型组;ETOH+HexaV:六维磷脂处理组
血清肌酐(SCr)测定 收集小鼠眼球血,以4 ℃,3000 rpm离心10 min。吸取上层血清检测SCr。
肾组织病理染色 肾组织经4%多聚甲醛固定、石蜡包埋、切片后,依次进行脱蜡水化,分别进行HE染色、Masson染色和PAS染色。取小鼠肾组织石蜡切片经脱蜡水化、抗原修复及封闭后,滴加血管紧张素转换酶2(ACE2)抗体(1∶200,GB15267,Servicebio)4 ℃过夜孵育,二抗孵育、DAB显色、苏木素复染,脱水封片后于显微镜下观察拍照。
转录组分析 取各组小鼠肾组织(n=5),由上海欧易生物技术有限公司进行转录组测序。提取mRNA并质检合格后建库,Illumina NovaSeq 6000测序和分析。数据质控后用分层剪接比对索引工具2(HISAT2)比对,高通量测序计数工具(HTSeq-count)定量。主成分分析(PCA)基于R软件prcomp函数,差异表达测序分析工具2(DESeq2)标准化并过滤低表达基因后纳入分析(n=24 347)。差异表达分析、京都基因与基因组百科全书(KEGG)通路富集分析及基因集富集分析(GSEA)均在上海欧易生物在线分析平台完成。差异基因筛选标准为对数2倍变化绝对值(|log2FoldChange|)≥1.0,校正后P<0.05。KEGG分析以校正后P<0.05为显著。GSEA分析以错误发现率(FDR)<0.25且P<0.05为显著。
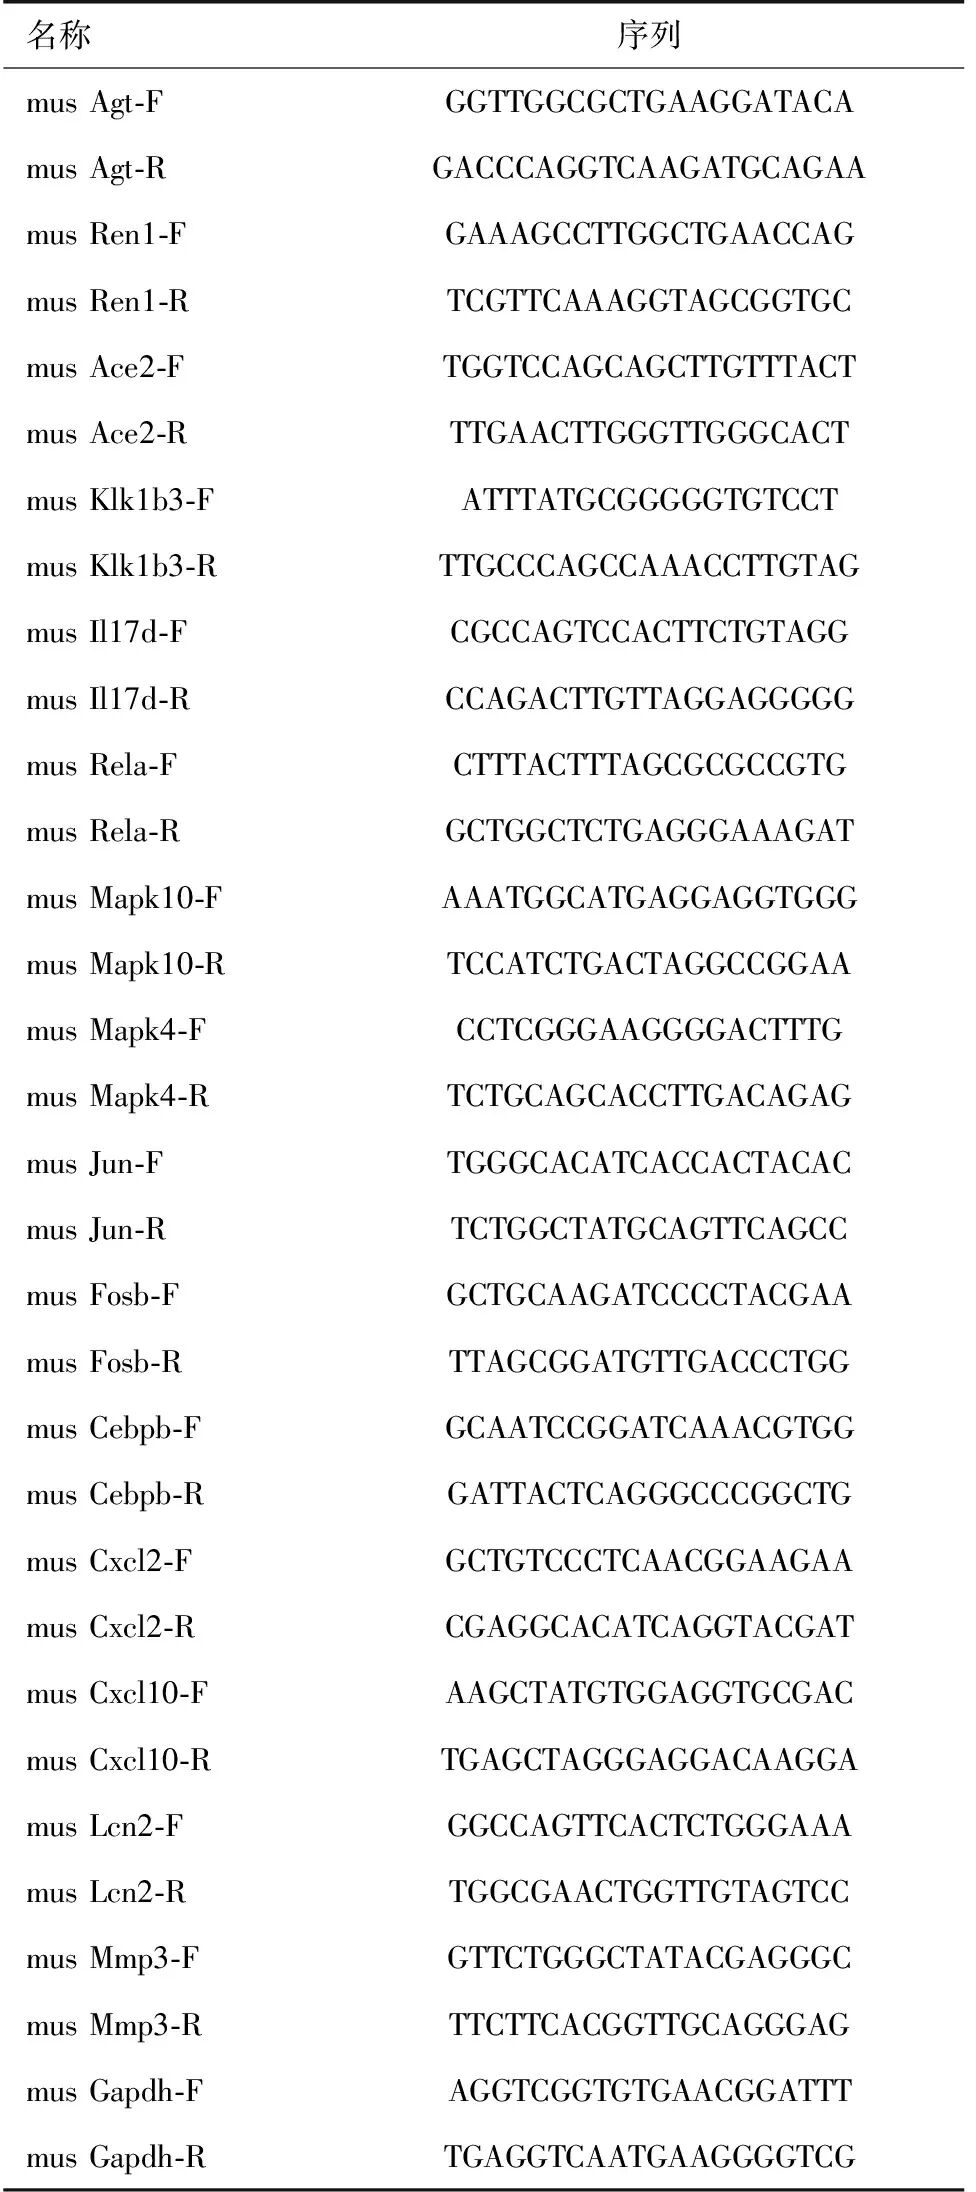
qPCR 取20 mg肾组织冰上提取RNA并逆转录,以GAPDH为内参,采用2-ΔΔCt法计算相对表达量。引物由上海捷瑞生物合成(表1)。
表1 实时定量PCR引物序列
统计学方法 采用GraphPad Prism 9.5软件进行描述性分析和统计作图,连续变量先进行正态性及方差齐性检验。正态分布的数据以均数±标准差表示,两组间比较用t检验或Mann-Whitney U检验。P<0.05为差异有统计学意义。
结 果
HexaV可改善长期酗酒所造成肾脏病理变化 与NC组相比,ETOH组SCr水平显著升高,而ETOH+HexaV组SCr水平显著低于ETOH组(图1B)。ETOH组肾脏HE染色可见肾小球萎缩,系膜增殖,间质炎性细胞浸润,肾小管上皮细胞空泡性变性。Masson染色可见更明显的蓝色胶原沉积,PAS染色可见紫红色线条增宽。在ETOH+HexaV组上述病理表现均得到改善(图1C)。表明HexaV可改善酒精所致肾脏损害。
HexaV对肾脏组织基因表达的调控作用 为进一步探讨HexaV改善酒精性肾损伤,每组选取5只小鼠全肾组织进行转录组测序。PCA显示三组分群有显著差异(图2A)。与NC组相比,ETOH组中,以|log2FoldChange|≥1.0且校正后P<0.05筛选出115个基因,其中上调基因72个,下调基因43个(图2B、D)。与ETOH组相比,在ETOH+HexaV组共筛选到334个基因,上调基因219个,下调基因115个(图2C、D)。
图2 A:三组的PCA结果;B:NC组vsETOH组差异基因火山图;C:ETOH组和ETOH+HexaV组差异基因火山图;D:NC组vsETOH组的差异基因与ETOH vs ETOH+HexaV的差异基因韦恩图;E:27个共有差异基因热图
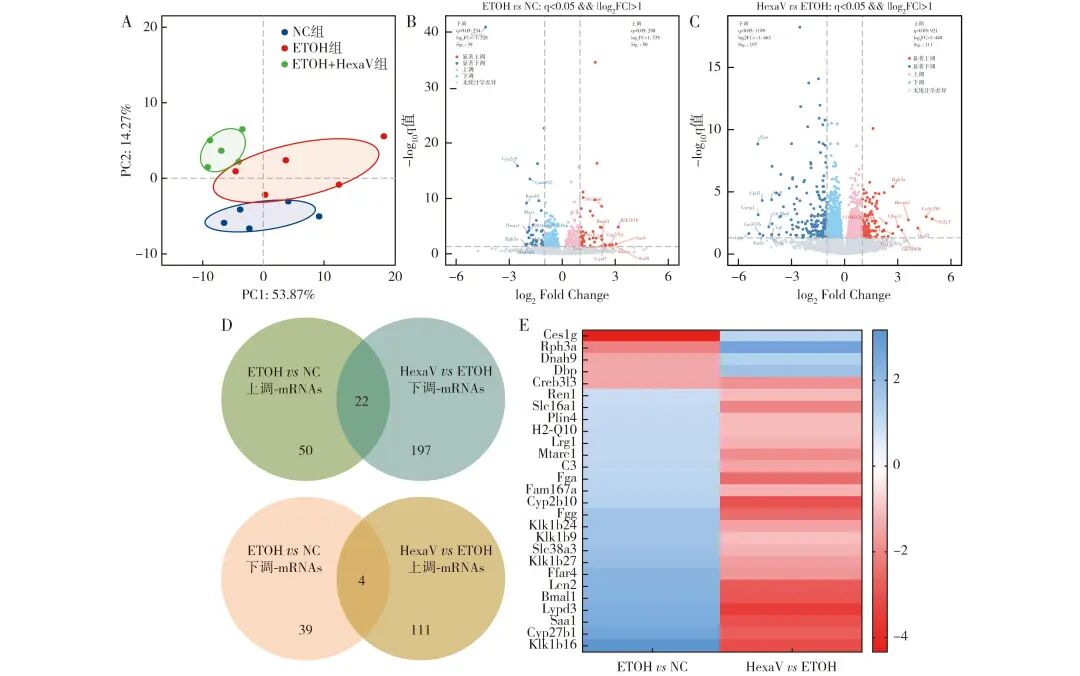
NC:正常对照组;ETOH:酒精相关肾损伤模型组;ETOH+HexaV:六维磷脂处理组;PCA:主成分分析;log2FoldChange:对数2倍变化;padj:校正后P值;ALD:酒精性肝病
ETOH组和ETOH+HexaV组中存在27个相同差异基因(表2),其中22个在ETOH组上调,在ETOH+HexaV组下调,包括Ren1、Slc16a1、Plin4、H2-Q10、Lrg1、Mtarc1、C3、Fga、Fam167a、Cyp2b10、Fgg、Klk1b24、Klk1b9、Slc38a3、Klk1b27、Ffar4、Lcn2、Bmal1、Lypd3、Saa1、Cyp27b1、Klk1b16。Ces1g、Rph3a、Dnah9和Dbp在ETOH组下降,在ETOH+HexaV组上调,Creb3l3在两组均下降(图2E)。
表2 各组27个差异基因的表达及显著性指标
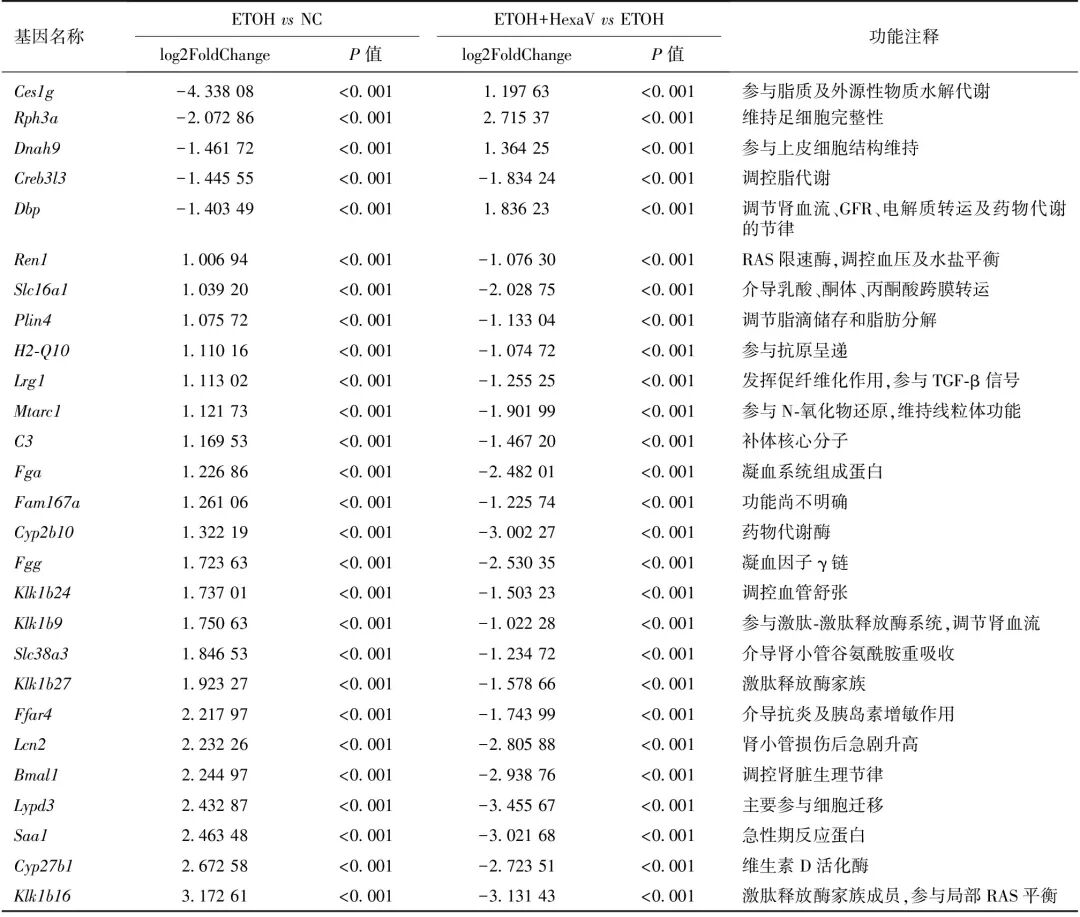
NC:正常对照组;ETOH:酒精相关肾损伤模型组;ETOH+HexaV:六维磷脂处理组;log2FoldChange:对数2倍变化;GFR:肾小球滤过率;RAS:肾素-血管紧张素系统;TGF-β:转化生长因子β
HexaV改善肾脏损伤相关通路 KEGG富集显示,差异基因显著富集于RAS、过氧化物酶体增殖物激活受体(PPAR)信号通路、补体和凝血级联、昼夜节律、内分泌和其他因子调节的钙重吸收、近端肾小管碳酸氢盐回收、花生四烯酸代谢、脂肪酸延伸、不饱和脂肪酸生物合成、IL-17信号通路等(图3A)。结合以上数据,HexaV可能通过改善酒精相关肾损伤小鼠的肾脏血管活性通路、脂质代谢及炎症信号网络,发挥多靶点协同保护作用。
图3 A:27个差异基因KEGG富集分析;B、D、F:RAS通路、IL-17信号通路及内分泌和其他因子调节的钙重吸收通路在ETOH组vsNC组(左)和ETOH+HexaV vs ETOH组(右)GSEA分析;C、E、G为对应通路富集基因表达量
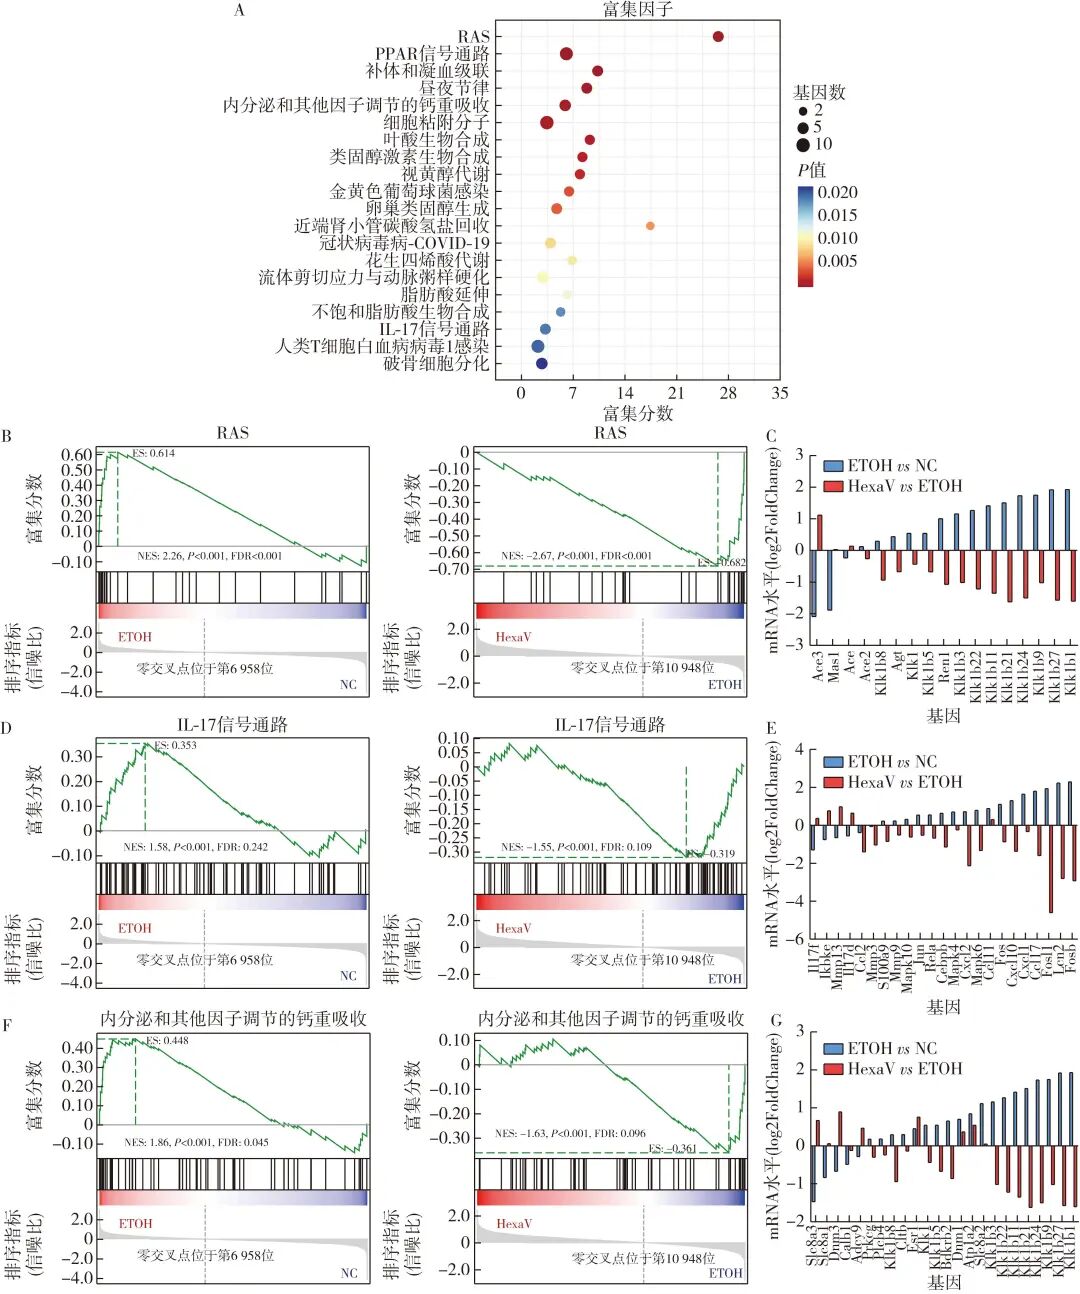
NC:正常对照组;ETOH:酒精相关肾损伤模型组;ETOH+HexaV:六维磷脂处理组;KEGG:京都基因与基因组百科全书;IL-17:白细胞介素17;RAS:肾素-血管紧张素系统;GSEA:基因集富集分析
进一步对差异基因进行GSEA富集分析发现,RAS、IL-17信号通路和内分泌及其他因子调节的钙重吸收均在ETOH组被激活,但在ETOH+HexaV组被逆转(图3B~G)。
HexaV应用改善了RAS及IL-17信号通路 ACE2免疫组化结果显示,与NC组相比,ETOH组小鼠ACE2表达量升高,而ETOH+HexaV组降低。同时,ETOH组中RAS通路中Agt、Ace2、Ren1和Klk1b3 mRNA水平上调,IL-17信号通路中IL17d、Mmp3、Mapk10、Jun、Rela、Cebpd、Mapk4、Cxcl2、Cxcl10、Lcn2和Fosb上调。提示酒精激活RAS并诱发代偿性ACE2上调及IL-17介导的炎症。而在ETOH+HexaV组上述指标显著降低(图4),表明HexaV通过抑制RAS驱动的血流动力学紊乱和IL-17介导的炎症反应发挥保护作用。
图4 A:三组ACE2免疫组化染色(×400);B:三组肾脏中RAS及IL-17信号通路中Agt、Ace2、Ren1、Klk1b3、IL17d、Mmp3、Mapk10、Jun、Rela、Cebpd、Mapk4、Cxcl2、Cxcl10、Lcn2和Fosb mRNA表达水平
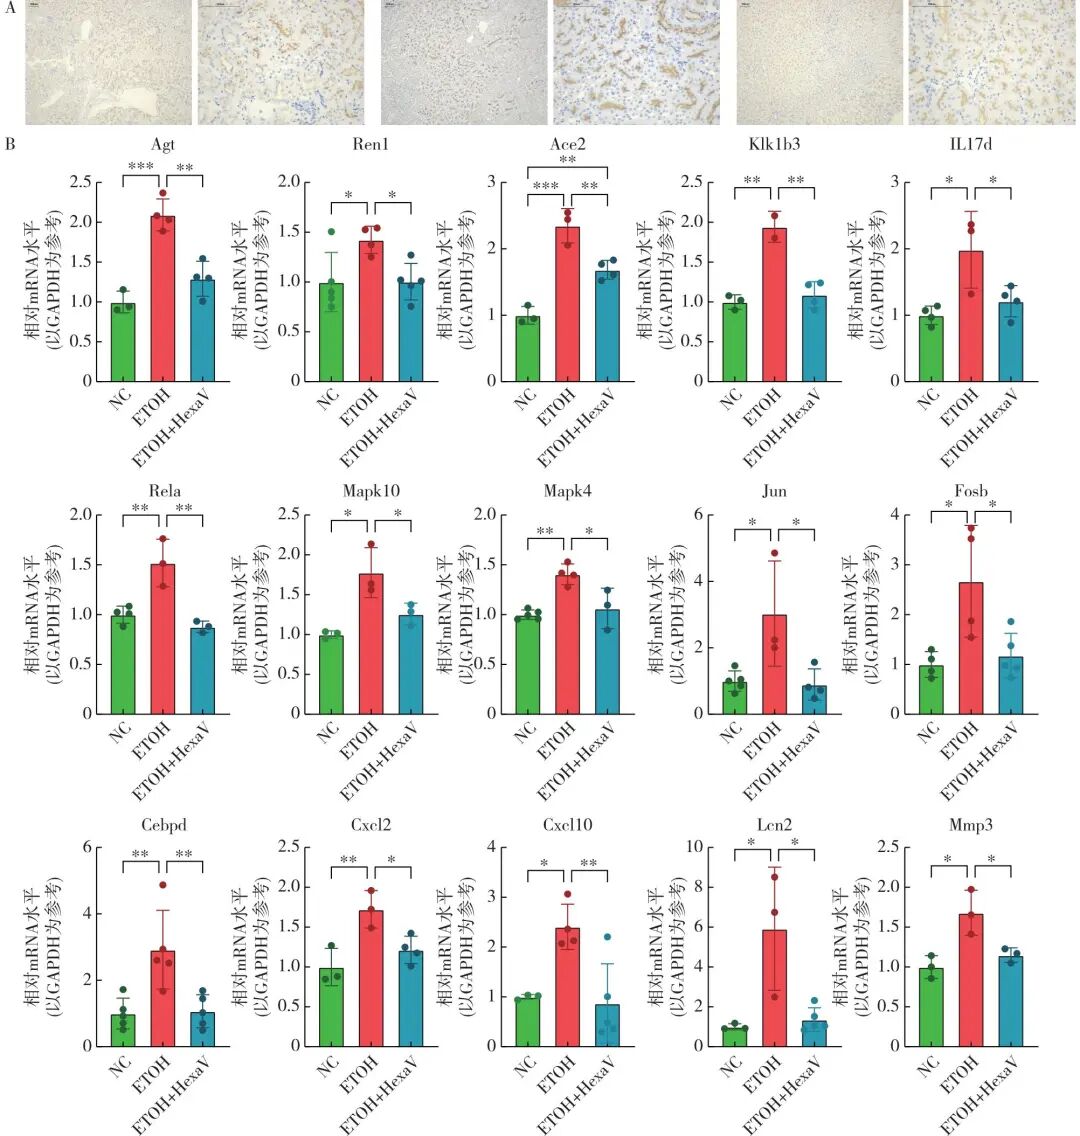
NC:正常对照组;ETOH:酒精相关肾损伤模型组;ETOH+HexaV:六维磷脂处理组;IL-17:白细胞介素17;RAS:肾素-血管紧张素系统;ACE2:血管紧张素转换酶2;数据以均数±标准差表示;采用单因素方差分析和Tukey多重比较检验;所有统计检验均为双侧检验;*P<0.05,**P<0.01,***P<0.001
讨 论
酒精可导致肾功能迅速且可逆地下降,引起SCr、尿素氮等含氮废物蓄积,进一步导致水电解质及酸碱平衡紊乱[11]。酒精所引起的肾脏损伤涉及氧化应激、炎症及线粒体功能障碍等多种机制[12-13],同时多器官间相互作用也会加重肾脏损伤,因此明确其具体分子机制并探索治疗方案是必要的。
肾脏作为高度血管化且对血流变化敏感的器官,易受肾内血流及血管活性信号紊乱的影响。ETOH组Agt、Ren1、Ace2及Klk1b3等RAS相关基因显著上调。尽管筛选出的差异基因不包括Agt及Ace2,但作为RAS通路的关键基因,qPCR及免疫组化结果显示其表达水平存在显著变化。Agt和Ren1表达升高提示局部血管紧张素Ⅱ(AngⅡ)生成增强。AngⅡ不仅促进血管收缩和肾小球高压[14],还可诱导氧化应激、激活核因子κB(NF-κB)信号并刺激促纤维化介质表达[15-16],与ETOH组观察到的病理变化一致。ACE2可将AngⅡ转化为Ang(1~7),减少AngⅡ累积[17]。其上调可能是代偿性保护反应,但不足以阻止肾损伤的进展。上述结果支持肾内RAS激活在酒精相关肾损伤中的核心作用。HexaV干预后RAS相关基因下调,提示其有助于改善肾内血流动力学紊乱。
炎症反应也是酒精诱导器官损伤的重要因素。IL-17通路通过Th17细胞介导炎症促进肾纤维化[18-19]。该通路激活后,ETOH组中IL17d、Cebpd、Cxcl2、Lcn2等基因表达上调。其中C-X-C趋化因子配体2(CXCL2)在急性肾损伤中显著升高[20]。Lcn2与慢性肾病炎症与不良预后密切相关[21]。结果提示IL-17信号通路是酒精相关肾损伤的炎症放大调控轴。HexaV干预后该通路相关基因下调,说明其可抑制IL-17驱动的炎症反应。既往研究表明,AngⅡ可通过激活NF-κB及丝裂原活化蛋白激酶等通路,促进Th17细胞分化及IL-17表达[22]。提示RAS与IL-17通路之间可能存在正反馈交互作用,但需特异性阻断实验进一步验证。
此外,酒精相关肾损伤与肝损伤密切相关。本课题组既往研究已证实HexaV可以改善酒精性肝病[23-24],但是本研究未开展特异性通路阻断的因果验证实验,不能排除其肾保护作用来源于系统性改善效应。
本研究存在以下局限性。首先,本研究基于小鼠慢性酒精暴露模型,需要临床样本或前瞻性研究进一步验证;其次,RAS和IL-17信号通路交互机制仍需进一步探索;此外,HexaV为复合制剂,各组分的相对贡献尚未明确,未来可通过单一组分干预或药理分离策略明确关键活性成分。另外,HexaV是否能够在肾脏组织中富集仍缺乏直接证据,可通过药代动力学或示踪实验验证。
小 结
综上所述,HexaV能显著改善慢性酒精暴露所致肾损伤,其保护作用可能通过抑制RAS和IL-17信号通路发挥多靶点肾脏保护作用,为酒精相关肾损伤的机制研究及治疗策略提供了依据。
参考文献
共 24 条 · 上下滑动查看全部
来源:肾脏病与透析肾移植杂志订阅号
作者:牛萱萱1 王 阳1 李家玺1 于 钒2 袁晓雪1 杨 松3
作者单位:1首都医科大学附属北京地坛医院 北京市感染性疾病研究中心(北京,100020);2河北医科大学公共卫生学院;3中日友好医院感染性疾病科
查看更多
 中国医学论坛报
 壹生
 今日肿瘤
 今日循环
 今日糖尿病
 今日口腔
 全科周刊
 脱贫地区农副产品网络销售平台
 助扶塬

京公网安备 11010202008182号
| 互联网新闻信息服务许可证编号:10120190017